
Глава 1. Описание связывания лигандов с нуклеиновыми кислотами
Решёточная модель адсорбции
Обычно эксперименты по связыванию лигандов с ДНК в растворе проводятся при постоянной температуре и постоянном давлении, и термодинамическим потенциалом такой системы является свободная энергия (см. ниже). В рамках решеточной модели адсорбции реальная молекула ДНК представляется в наиболее общем виде — как одномерная матрица, или линейная решетка центров связывания. Эти центры связывания называются «реакционными центрами» [14]. В зависимости от соотношения размеров ДНК и молекулы лиганда, а также в зависимости от природы взаимодействий ДНК-лиганд в качестве реакционных центров матрицы могут выступать не только отдельные атомы пар оснований, но и целые участки молекулы ДНК, включая группы атомов сахарофосфатного остова.
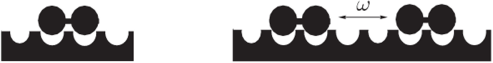
Молекула лиганда также представляется в общем виде как структура, которая содержит одну или несколько групп атомов, способных вступать во взаимодействие с центрами связывания матрицы. Обычно считается, что лиганд может образовывать комплекс с рядом расположенных подряд центров связывания матрицы, совокупность которых называется связывающим местом (см. рис. 1.1а).
Следует заметить, что реальные взаимодействия лигандов с ДНК могут происходить по-разному, в зависимости от размера участка ДНК, вовлеченного во взаимодействие с лигандом, молекулярных масс молекул лиганда и ДНК. Если в качестве лигандов выступают низкомолекулярные соединения, то естественно предположить, что адсорбция лиганда не искажает (или незначительно искажает) молекулу ДНК, выступающую в роли матрицы: регулярная решетка центров связывания не изменяется при адсорбции. Другая ситуация может возникнуть, если лигандом является макромолекула белка или даже несколько белков (например, комплекс белков, входящих в состав РНК-полимеразы). Здесь мы ограничимся рас смотрением ситуации, когда решетка реакционных центров не трансформируется при адсорбции лигандов.

(а) (б)
Рис. 1.1. Адсорбция лиганда на матрице, а) Показано связывание лиганда из раствора. К — константа связывания, характеризующая взаимодействие лиганда со связывающим местом на матрице, в данном случае при адсорбции лиганд занимает два реакционных центра матрицы, б) Схематически показано взаимодействие между адсорбированными лигандами, а> — параметр кооперативности, описывающий такое взаимодействие.
Так как речь идет о физической адсорбции, то взаимодействие между центрами связывания матрицы и реакционными центрами лиганда имеет обратимый характер. Обычно это невалентные, вандерваальсовы или ди-поль-дипольные взаимодействия. Энергия таких взаимодействий составляет, как правило, несколько кТ (А. В. Киселев с соавторами связывает специфическую адсорбцию с наличием кулоновских сил, однако специфика связывания в целом выходит за пределы нашего рассмотрения).
Решеточная модель адсорбции включает описание взаимодействий между адсорбированными лигандами, характер которых определяет свойства модели (рис. 1.16). С точки зрения статистической механики поведение адсорбированных на матрице лигандов во многом аналогично поведению одномерного «решеточного газа», частицы которого взаимодействуют между собой. Такие взаимодействия могут включать как стерическое отталкивание между молекулами лигандов, конкурирующими за одни и те же центры связывания на ДНК (в этом случае принято говорить об «исключенном объеме» молекул решеточного газа), так и электростатические взаимодействия между атомами ближайших соседних молекул лиганда, сближенными на матрице.
Заметим, что терминологическое словосочетание «реакционный центр», которое используется в литературе для обозначения одного центра связывания лиганда на матрице [1-4], может ввести в заблуждение: с понятием реакции обычно связывают в химии ряд процессов, имеющих необратимый характер, в то время как процесс физической адсорбции является обратимым. Здесь мы будем использовать наряду с термином «реакционный центр», как эквивалентный, термин «центр связывания». С другой стороны, существует устойчивое сочетание слов «реакционный центр» фермента. Такой центр включает в себя место связывания лиганда. Если рассматривать адсорбцию на ДНК лиганда, размер которого меньше радиуса молекулы ДНК, то понятие реакционного центра матрицы будет в чем-то аналогично понятию «реакционный центр фермента»: связывание лиганда здесь происходит также многоточечным образом. Связывание лиганда в реакционном центре фермента является первым актом в серии процессов, которые приводят к химической трансформации лиганда, в то время как связывание лиганда с ДНК обычно не приводит к необратимым последствиям для лиганда. Однако следует заметить, что при связывании белков с нуклеиновыми кислотами может существенно искажаться как структура НК, так и молекулы белков, в которых связывание с ДНК и РНК инициируют конформационные превращения.
Рассмотрим пример связывания молекулы дистамицина А с ДНК. В соответствии со схемой связывания, предложенной Заседателевым и со-авт. [5], дистамицин А погружен в малую бороздку ДНК таким образом, что NH группы лиганда выступают в качестве доноров водородных связей, а акцепторами служат N3 атомы аденина и 02 атомы тимина (рис. 1.2). Кроме того, концевая положительно заряженная NH3 группа лиганда располагается глубоко в узкой бороздке, в области максимальной плотности отрицательного электростатического потенциала. Рентгеноструктурный анализ подтвердил эту схему, добавив лишь факт наличия бифуркационных водородных связей: одна NH группа лиганда может образовать одновременно сразу две водородные связи — с N3 атомом аденина и 02 атомом тимина [6].
Одна химическая группа лиганда взаимодействует сразу с двумя разными химическими группами матрицы. Целый ряд атомов матрицы формируют один центр связывания для одной группы лиганда. Предсказанная на основании анализа первичных экспериментальных данных по адсорбции молекулярная модель комплекса дистамицина А с ДНК стала сейчас общепринятой, что можно рассматривать как одно из самых значительных достижений применения теории физической адсорбции к анализу взаимодействий лигандов с ДНК.
Ниже кратко описаны основные этапы анализа связывания лигандов с нуклеиновыми кислотами (в соответствии со схемой, показанной на рисунке 0.1).
1) Термодинамическая модель адсорбции. При построении физической модели адсорбции необходимо определиться: в рамках какой именно термодинамической системы будет рассматриваться взаимодействие молекул НК с лигандами. Обычно речь идет об открытой системе, которая
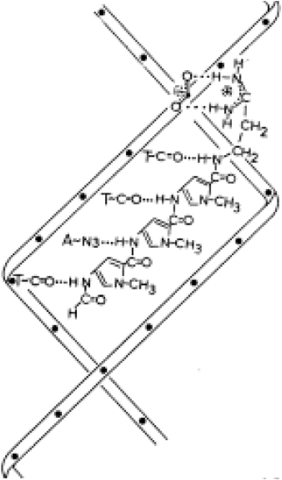
Рис. 1.2. Схема связывания дистамицина А с участком ДПК. NH группы антибиотика образуют водородные связи с акцепторами водородных связей - азотами и кислородами расположенных подряд четырех АТ пар ДНК (по Заседателе-ву и соавт. [5])
обозначается (/z, р, Г) — здесь независимыми переменными являются химический потенциал лиганда в растворе р, давление р и температура Т [7]. Рассматривая в качестве системы матрицу с адсорбированными лигандами, которая находится в растворе при постоянном давлении и постоянной температуре, мы полагаем, что эта система является открытой: лиганды могут адсорбироваться на матрице и десорбироваться с нее, т. е. происходит обмен веществом с раствором, в котором находятся свободные молекулы, имеющие определенный химический потенциал.
Переход от статистической механики к термодинамике предполагает установление такого способа усреднения различных величин по динамическим состояниям, который бы позволил получаемые средние по ансамблю поставить в соответствие термодинамическим функциям системы [7]. Для проведения такого усреднения существуют стандартные процедуры (см. ниже).
2) Математическая модель адсорбции. На этом этапе для описания связывания могут применяться разные методы статистической термодинамики, позволяющие рассчитать характеристики адсорбционной системы.
Обычно это матричный метод [8, 9] (или метод рекуррентных соотношений [2, 10-12], который является его модификацией), комбинаторный метод [1], метод генерирующих функций [13, 14]. Результатом является система уравнений, формирующих математическую модель адсорбции. Решением такой системы являются зависимости концентрации адсорбированных молекул лиганда от концентрации свободных молекул лиганда в растворе. Можно построить и другой ряд теоретических зависимостей — например, распределение расстояний между адсорбированными лигандами для определенной концентрации лиганда в растворе. Исследование формы этих зависимостей позволяет провести классификацию моделей адсорбции и предложить методы, которые могут быть использованы для анализа конкретных экспериментальных данных.
3) Анализ данных. Математическая модель является посредником между теорией и экспериментом: она позволяет на основании физической модели адсорбции сделать определенные предсказания относительно того, как должны вести изотермы адсорбции (рис. 0.1). С другой стороны, экспериментальные изотермы (кривые связывания) позволяют сделать качественные и количественные выводы относительно физической модели адсорбции.
Заметим, что физическая модель адсорбции может включать молекулярную модель связывания. Однако анализ кривых связывания, как и другого рода термодинамических данных обычно позволяет установить самые общие свойства модели, которую мы называем решеточной моделью адсорбции. В такой модели не конкретизируется, какие группы лиганда взаимодействуют с центрами матрицы, а оцениваются размер участка матрицы, который занимает молекула адсорбированного лиганда как физическое тело, и энергия взаимодействия лиганда с таким участком. Если в модели адсорбции рассматривается несколько типов комплекса, которые образует лиганд на матрице и учитываются кооперативные взаимодействия между адсорбированными лигандами, то необходимо определить энергии образования этих комплексов и параметры кооперативных взаимодействий.
На основании анализа кривых связывания выбирается модель адсорбции и определяются её параметры. Такой выбор часто осуществляется неоднозначно: требуется привлечение дополнительных данных об экспериментальной системе и проведение специального математического исследования, поскольку связь между молекулярной моделью адсорбции и экспериментальными данными опосредована математической моделью. Кроме того, сами экспериментальные данные зачастую оказываются непрямыми: обычно измеряется не число связанных и свободных молекул, а сигналы, которые требуют интерпретации.
Заметим, что существует специфика систем с малым числом частиц. Рассмотрению подобных систем посвятил ряд статей и монографий Террелл Хилл [15-17]. К этой теме также обращались Лев Блюменфельд, Александр Гросберг и Александр Тихонов [18]. Однако только в последнее время, в связи с развитием подходов к описанию поведения молекул в клетках с одной стороны, и в связи с прогрессом в области нанотехнологий с другой, возник общий интерес к этим системам.
Число моделей адсорбции, предложенных для описания связывания, относительно невелико. Можно сказать, что в основании всех их лежит модель связывания протяженного лиганда с полимером, предложенная в работах Брэдли, Лифсона и др. [19] и Крозерса [9] и развитая в работах Турского и Заседателева [1, 2, 10-12], где впервые были рассмотрены кооперативные взаимодействия между адсорбированными лигандами для этого случая. Модель Турского и Заседателева известна англоязычному читателю как модель Мак-Ги и фон Хиппеля [20]. Эти авторы несколько позже, зато более доходчиво и подробно изложили модель Турского и Заседателева так, что она стала известна широкому кругу молекулярных биологов и биохимиков. В наших работах совместно с Турским и Заседателе-вым [21-24] произошло дальнейшее развитие этой «базовой» модели. Однако в теории адсорбции важно рассмотреть не только различные варианты моделей адсорбции, но и уделить внимание методам описания и анализа связывания лигандов с макромолекулами. И здесь существует ряд подходов, связанных с развитием той или иной системы представлений. Наиболее общий путь, позволяющий получить уравнения адсорбции, включает расчет большой статистической суммы или свободной энергии системы (смотри, например, работу Шеллмана [25], в которой развернута система представлений о связывании лигандов с макромолекулами). Теоретики, работавшие в области адсорбции лигандов на биополимерах, подробно рассмотрели те или иные аспекты связывания. Таким образом, вышли десятки работ, которые сформировали целое направление в науке.
Однако экспериментаторы нуждаются не только в общих представлениях, но и в методах анализа конкретных кривых связывания. Одним из таких методов может служить сравнение экспериментальных данных с наборами теоретических кривых, которые соответствуют как разным моделям адсорбции, так и разным параметрам связывания. Набор таких кривых рассмотрели в своих работах Шварц и Станковский [26—28]. В целом подход Шварца направлен именно на то, чтобы показать, как изменяются кривые связывания в зависимости от используемой модели и ее параметров. Можно сказать, что Шварц заложил основания «модельного исследования» адсорбционных систем, которое будет развито дальше.
Эпштейн [29] рассмотрел кооперативное связывание лигандов на матрицах конечной длины и исследовал, как влияет длина матрицы на форму кривых связывания. Он показал, что изотермы адсорбции для связывания лигандов на матрицах, длина которых в десятки раз превосходит размер связывающего места, мало отличаются от изотерм адсорбции лиганда на матрицах «бесконечной» длины. По этой причине мы не будем здесь подробно рассматривать связывание на матрицах конечной длины.
